原文署名:Fly on the Wall
我喜歡寫蒼蠅。比如這裏就零零碎碎的寫了一些關於蒼蠅和秘密的愛情,加上我是科幻深度愛好者,所以當我看到項目的研究成果時,還是很感興趣的。
為什麼選擇果蠅
果蠅是神經科學家以及我的老朋友。
它的基因組早在2000年就被完整定序,其神經系統結構簡單卻足夠複雜,足以展現學習、記憶、趨避等行為。更重要的是,果蠅成蟲的大腦大約只有十萬個神經元——足夠多又足夠少。相比人類的860億個,這個數字在計算和實驗上都處於可操作的邊界。它不是最簡單的生物,也不是最複雜的,恰好站在了「可窮舉重建」這條線的邊緣。這使它成為全腦仿真(Whole-Brain Emulation, WBE)研究的首選對象。
整個計劃的第一步是取得「連接組」(connectome)——大腦中所有神經元及其突觸連接的完整地圖。研究人員將果蠅大腦切成數萬片超薄切片,每片厚度不超過數十納米,再以高解析度電子顯微鏡逐層掃描,獲得數以百萬計的2D影像。接著,通過電腦算法與大規模人工標注,將這些影像重建成完整的3D結構:每個神經元的位置、形態、分支走向,以及它們之間的每一個突觸接點,均被精確記錄在案。
這份連接組告訴我們「從哪連到哪」,是一張無比精緻的配線圖,是這個計劃的物質基礎,也是科學史上前所未有的成就。就這點而言怎麽贊譽都不爲過。
剩下的只能靠猜
然而,配線圖本身並不完整。在真實神經網絡中,每個突觸都具有「極性」(sign),而神經傳遞物質(neurotransmitter)決定了這個極性。
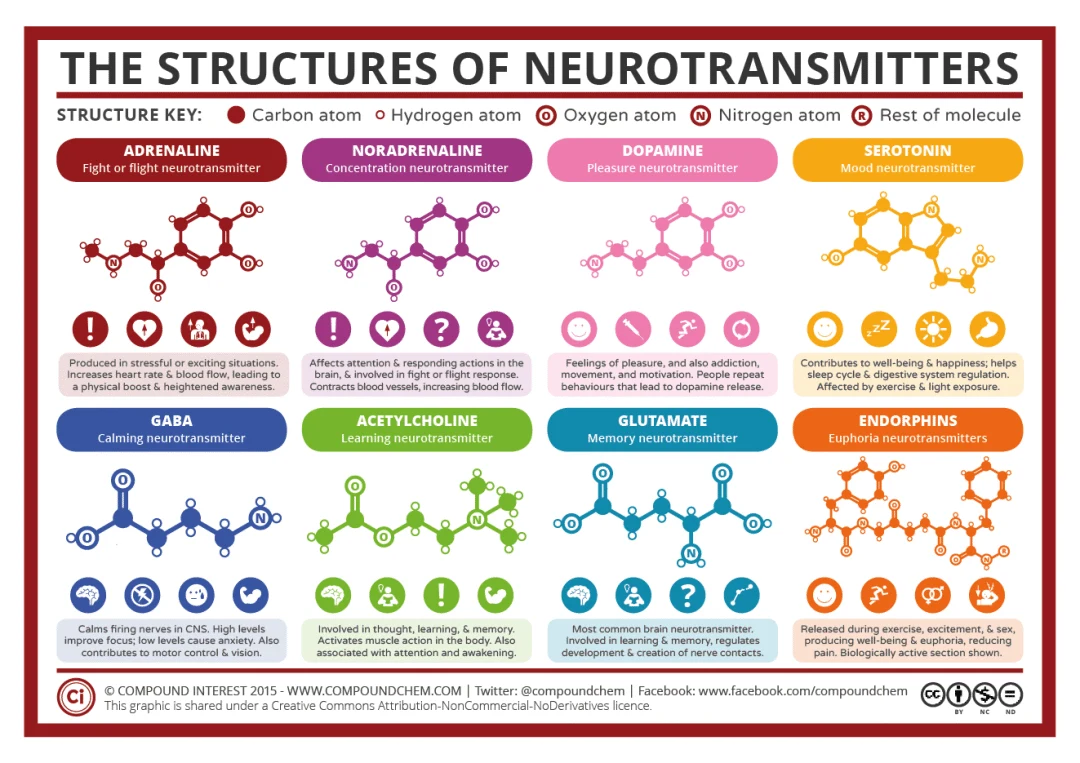
它可能是興奮性的(excitatory),讓下游神經元更容易放電,通常是乙醯膽鹼(acetylcholine, ACh)——果蠅腦中最常見的興奮性遞質。也可能是抑制性的(inhibitory),壓制下游神經元的活動,通常包括γ-胺基丁酸(GABA)或穀氨酸(glutamate,在果蠅腦中Glu常作用於氯離子通道,產生抑制效果)。
這兩種效果在功能上截然相反,要讓數字模型(如LIF模型)模擬真實神經活動,就必須知道每個突觸的遞質類型,來決定連接的「權重正負」(正=興奮,負=抑制)。
但EM圖像無法直接看到遞質分子,只能看到突觸的超微結構(如突觸囊泡的形狀、密度、T-bar結構等)。因此,需要機器學習從這些圖像特徵中「推斷」遞質類型。
除此之外,還有其他如多巴胺(dopamine)、血清素(serotonin)、章魚胺(octopamine)則是調節性(modulatory),不直接分類為興奮/抑制,但可用於模型調整。
於是,研究團隊採用了機器學習模型來預測每個突觸的極性。模型以已知的突觸形態特徵作為訓練資料,對未標注的突觸給出興奮或抑制的概率估算。根據目前的驗證結果,此預測的單突觸準確率約為87%——這是相當出色的成績;但同時也意味著每一百個突觸中,有約十三個的極性可能與真實情況相反。
行為的湧現
在連接組加上推算的突觸極性之後,研究人員將整個神經網絡輸入電腦模型,賦予每個神經元基本的電生理參數,讓信號在這張巨大的網絡中流動。
結果令人驚嘆:這個數碼大腦展現出與真實果蠅高度一致的行為模式——趨光、感知振動、對氣味的差異化反應。從行為輸出的角度看,這隻存在於電腦中的果蠅「活靈活現」。
這個系統因此是一個「高度忠實但帶有推斷成分的混合模型」:它的結構來自真實測量,它的部分功能參數來自統計推算,它的行為則從這兩者的共同作用中湧現而出。
科學vs哲學的含義
那麽,在科學層面,這13%意味著什麼呢?
從工程角度看,87%的準確率相當亮眼;而且神經網絡具有強大的冗餘性,所以局部的錯誤往往被整體結構的統計特性所緩衝。這也解釋了為什麼人類可以日抛十數萬神經元卻行為輸出仍然合理——宏觀的功能可以對微觀的誤差保持相對穩健。
但這也揭示了全腦仿真技術目前真實的天花板:我們能夠重建「拓撲」(topology),卻還不能完整重建「動力學」(dynamics)。連接組只是個靜態的圖,大腦則是動態的過程。突觸極性、神經調質的分佈、離子通道的密度——每一個層次都可能引入偏差,而這些偏差的累積效應,在更複雜的神經系統中可能遠比在果蠅中的嚴重。
所以這個實驗的真正科學貢獻,其實並不(僅僅)在於「成功複製了果蠅」,同時也在於精確地標定了目前技術的邊界,以及指出了下一步需要攻克的具體問題。
然後從哲學的層面來看。比如,當我們說這隻數碼果蠅「活靈活現」,我們的判斷標準是什麼呢?是行為輸出。我們從外部觀察,看到它對光、氣味、振動的反應符合預期,於是宣告成功。
但這個判斷是從第三人稱視角做出的。它告訴我們的,是「這個系統在我們的觀察尺度上行為正常」,而不是「這個系統在內部層面與原件一致」。這兩個命題並不等價。
神經網絡的冗餘性恰好能夠掩蓋局部錯誤,使得行為輸出即使在存在結構性偏差的情況下,仍可保持宏觀穩定。我們看到的「正確」,可能是對錯誤的遮蔽,并非對正確的確認。
一隻特立獨行的蠅
這裡我們需要引入一個假設性的問題:如果果蠅具有某種形式的主觀體驗(qualia)——哪怕是最原始的、最稀薄的感受性——那麼那13%的極性錯誤,對「它/(他?)」而言意味著什麼呢?
行為的貌似穩健性並不一定能延伸到體驗的連續性。一個在感受層面「扭曲」的獨特大腦,完全可以在行為層面足夠「正常運作」。如果一個人腦中某些突觸的興奮與抑制暫時失靈,他的某些行為輸出可能會表現失常,但是足夠“他者”的非人類研究者一定能夠發現變化和厘清因果鏈嗎?
問題就在於,這個問題原則上無法從第三人稱視角回答。這不僅是技術問題,這是認識論的根本限制。
我們之所以覺得這隻數位果蠅「像真的」,根本原因是我們不是果蠅。我們對果蠅沒有任何本體論上的第一手認識——我們無法從內部核驗這個複製品是否與原件一致,因為我們從來就不知道「從果蠅內部看」是什麼感覺。
「那些蒼蠅之所以會被我認為是同一隻,那是因為我从根本上並不瞭解它們,更不關心它們。實際上,我更關心沒有它們。在這樣的“冷漠”之下,它們顯得長的一模一樣,又有什麼奇怪呢?」
這個困境可以推廣到任何他者。我們判斷另一個人是否具有意識,也是通過行為相似性和神經相似性做出的推斷,而非直接的本體論接觸。果蠅的案例只是把這個通常被遮蔽的事實擺得更加裸露:所謂「忠實複製」,始終是站在觀察者立場上的忠實,而非從被複製者立場上的忠實。
全腦仿真的計劃,在哲學上依賴一個從未被明確論證的假設:如果信息處理的結構被忠實複製,主觀體驗也會隨之複製。這個假設被稱為「功能主義」(functionalism)的一個版本——意識是功能的產物,而非特定物質基底的屬性。(同時作爲gestalt和還原論在不同層面適用性的支持者,我被撕裂了......
但功能主義面對的困難是深刻的。即使承認意識與功能有關,「相同的功能」究竟在多大程度上能夠保證「相同的體驗」,仍然是開放的問題。那13%的突觸極性偏差,在功能層面可以被冗餘性吸收;但如果意識不僅僅依賴宏觀功能,而是依賴某種更精細的動力學特性,那麼這個偏差就可能在體驗層面造成不可見的裂縫。
我們不知道這條裂縫是否存在,因為我們沒有任何工具可以從外部測量它。我傾向於這不是目前技術的局限,這是意識問題的內在結構所帶來的認識論壁壘。
Where the science ends
果蠅全腦仿真實驗是了不起的科學成就。
它展示了連接組重建的可行性,驗證了行為湧現的可能,也精確地標定了目前技術在哪裡觸到了天花板。從這個意義上說,它不是終點,而是一張精確的誤差報告。
但是在回答“上傳意識是不是已經到了門口”甚至“我們如何證明自己不是數碼複製品”這樣充滿點擊率的問題之前,我們得思考一下這個實驗同時開啟的那個更值得提出和獲得解答的問題:即使技術日趨完善,即使某天突觸極性的預測準確率達到99.99...9%,「功能等價」與「體驗等價」之間的鴻溝是否會自動消失?
或者說,那道鴻溝根本不是技術問題。意識本身的內在結構就是這麽要求的——那是一道無論從哪個方向走都無法到達對岸的不對稱性。
在封閉系統中,複製過程會引入額外的熵,使得複製品與原件的信息保真度不可能達到100%,除非投入額外能量補償,因為熱力學不允許等能耗下的完整複製。但是投入多少額外能量才能走盡那個13%或者0.00000...1%呢?
長恨此身非我有,何時忘卻蠅蠅?
——